《Nature Immunology》에 발표된 한 연구는 인간 조절 T세포(Treg)의 불안정화를 재현하는 체외 모델을 확립했다: IL-6, IL-1β, IL-23에 지속적으로 노출되면 Treg는 점진적으로 FOXP3와 HELIOS 발현을 잃고, 억제 기능을 상실하며 염증성 인자를 분비하게 된다. 반면 IRF4 유전자 하류의 원위 조절 요소를 녹아웃하면 이 재프로그래밍 과정을 현저히 차단할 수 있다. 연구 근거는 원발성 인간 Treg의 체외 실험과 마우스 이종 이식편대숙주병 모델에서 비롯되었다.
연구 배경: Treg의 안정성은 당연한 것이 아니다
Treg는 FOXP3를 발현하는 CD4+ T세포의 한 종류로, 다른 면역세포의 활성을 억제하는 역할을 하며 말초 면역 관용의 핵심 세력이다. FOXP3 기능이 결손되면 마우스와 인간 모두에서 전신성 면역 이상이 나타난다.
바로 이러한 이유로 Treg의 증식 또는 이식은 면역 관용을 유도하는 잠재적 전략으로 여겨져 왔으며, 여러 이식 및 자가면역 전임상 모델에서 효과를 보였다.
그러나 문제는 다음과 같다: 마우스 계통 추적 연구는 만성 염증 환경에서 Treg가 후성유전학적 재프로그래밍을 겪어 Foxp3 발현을 잃은 "ex-Foxp3" 세포로 전환되고, 염증 촉진 기능을 획득함을 시사한다.
인간 Treg 역시 사이토카인에 의해 불안정화되기 쉬운지에 대해서는 이전까지 명확하지 않았다. 이것이 바로 본 연구가 답하고자 하는 질문이다.
연구 목적: 인간 Treg 불안정화 모델의 확립 및 분석
저자의 목표는 두 가지 층위로 이루어진다. 첫째, 재현 가능한 인간 Treg 불안정화 체외 모델을 확립하여 계통 정체성이 실제로 상실되는지를 확인하는 것이다. 둘째, 이 모델을 활용하여 Treg 정체성을 유지하거나 붕괴시키는 핵심 분자 노드를 찾아내는 것이다.
연구가 주목하는 것은 단기적인 유전자 발현 변동이 아니라 세포 운명 차원의 변화, 즉 후성유전학적 지형이 다시 쓰여지는지 여부이다.
연구 방법(간략)
연구자들은 건강한 공여자의 말초혈액에서 CD4+CD25+CD127lo/− Treg를 분리하고, 9일마다 한 차례씩 CD3/CD28 자극을 실시하며, IL-2 단독 또는 IL-2와 염증성 사이토카인 병용 조건에서 장기 배양하였다.
정체성 판정은 FOXP3와 HELIOS 두 전사인자를 핵심 지표로 삼았으며, FOXP3의 TSDR(Treg 특이적 탈메틸화 영역) 메틸화 수준을 계통 확정의 분자적 증거로 사용하였다.
이를 바탕으로 저자들은 단일세포 다중오믹스(전사체+염색질 접근성), 벌크 ATAC-seq, CRISPR–Cas9 비암호화 영역 절제, CRISPRa 과발현 및 이종 GvHD 마우스 모델을 결합하여 인과관계를 단계적으로 검증하였다.
핵심 발견: AP-1–IRF4 축이 정체성 붕괴를 주도한다
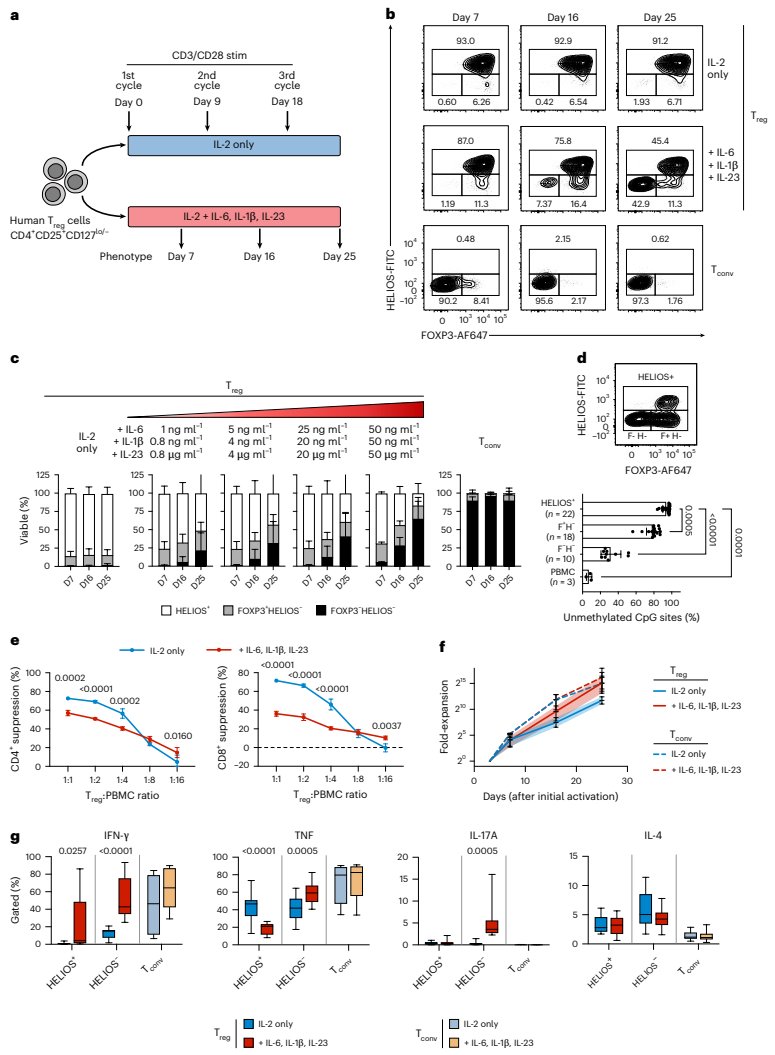
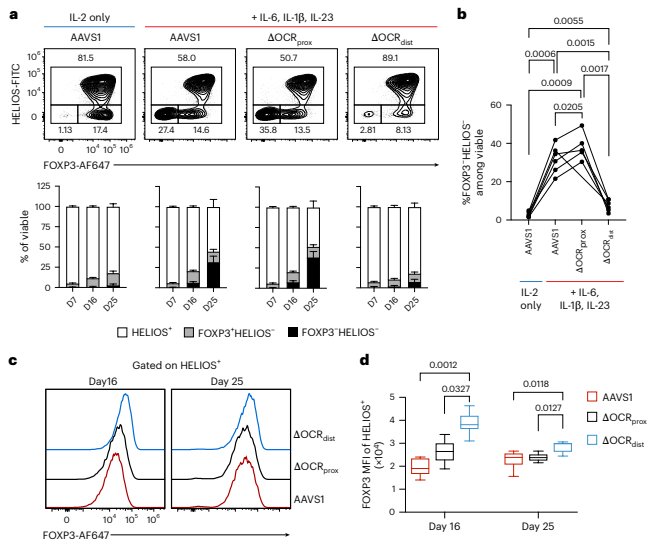
첫째, 불안정화는 측정 가능한 점진적 과정이다. IL-6, IL-1β, IL-23 삼중 인자의 지속적 작용 하에서 FOXP3−HELIOS− 세포 비율은 농도와 시간에 따라 증가하였다; 이들 세포의 TSDR은 정도의 차이는 있으나 재메틸화가 나타나 상태 전환 중임을 시사한다. 기능적으로 이들은 억제 활성이 감소하고 증식이 증가하며, IFN-γ, TNF 및 IL-17A 발현 능력을 획득하였다.
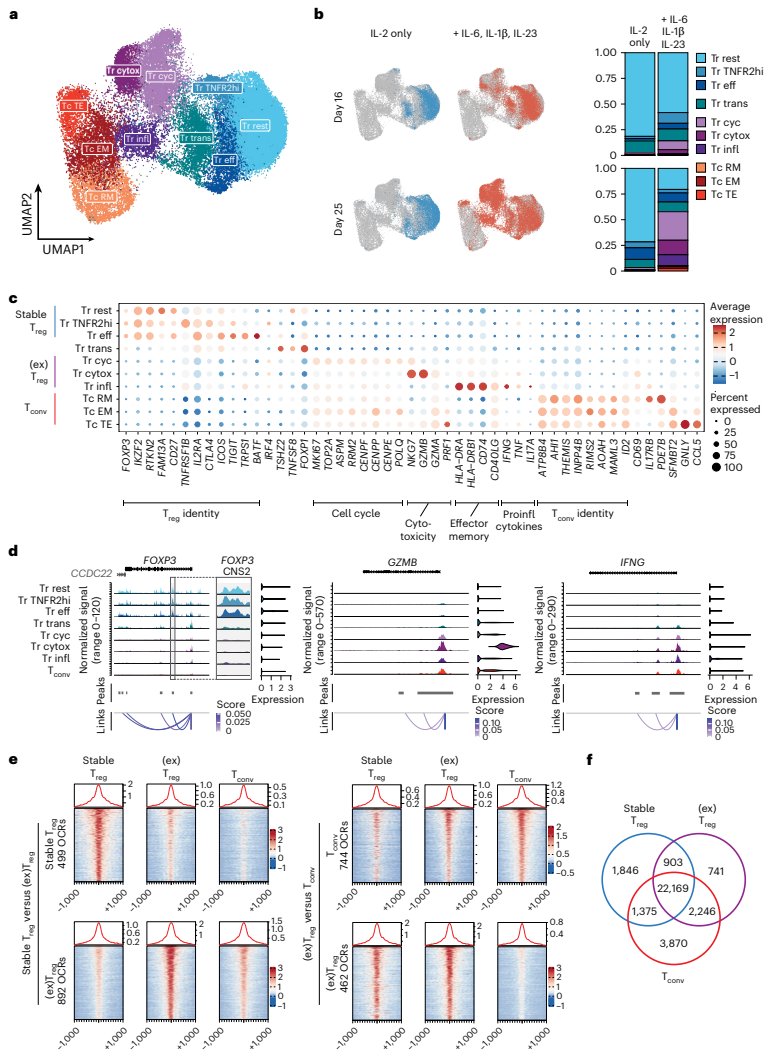
둘째, 염색질 지형이 체계적으로 다시 쓰여진다. 단일세포 다중오믹스 결과, 불안정화 세포는 AP-1, RUNX, ETS 및 IRF4 모티프에서 접근성이 증가하고 FOXP3 CNS2에서 접근성이 감소하였다; 일부 개방 영역은 불안정화 세포에만 특이적으로 나타나, 이들이 안정적 Treg와도, 통상적 T세포와도 다르다는 것을 보여준다.
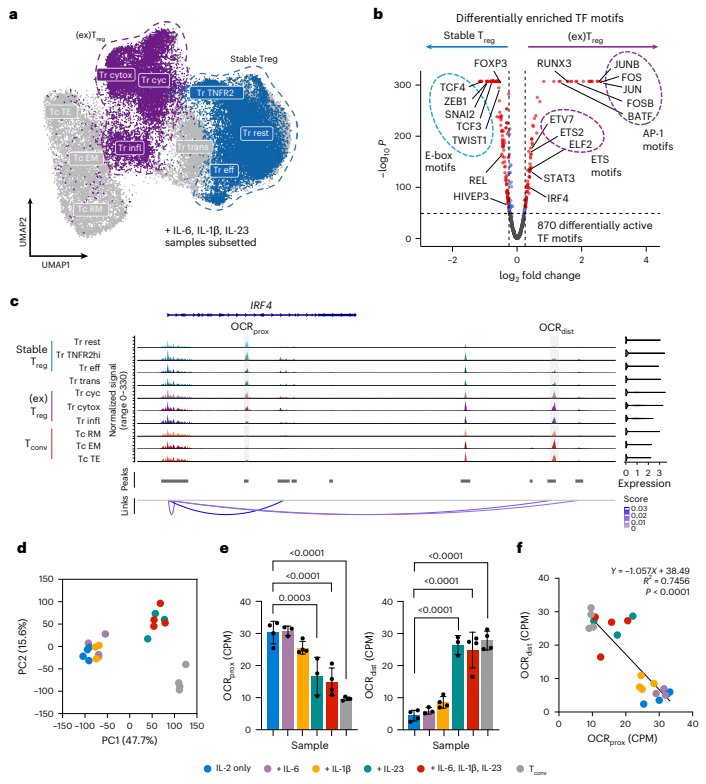
셋째, IRF4 좌위에서 "인핸서 스위치"가 나타난다. IRF4 유전자 내 제6 인트론의 근위 요소(OCRprox)는 접근성이 감소한 반면, 전사 개시 부위 하류 약 40 kb의 원위 요소(OCRdist)는 접근성이 증가하였으며, 후자는 IRF4 발현과 양의 상관관계를 보였다. 단일 인자 비교에서 IL-23이 염색질 변화에 가장 크게 기여하였다.
넷째, 원위 요소의 절제는 불안정화를 차단할 수 있다. CRISPR로 OCRdist를 절제한 후 FOXP3−HELIOS− 세포 비율은 약 85% 감소하였고, 안정적 Treg의 FOXP3 발현은 증가하였으며, 억제 기능은 체외 및 GvHD 모델 모두에서 더 우수하였다. 반대로 IRF4와 AP-1 패밀리 구성원 BATF를 과발현하는 것만으로도 염증 인자가 없는 조건에서 불안정화를 부분적으로 재현할 수 있었다.
혁신점 또는 돌파구
이전의 IRF4와 Treg에 관한 연구는 대부분 단백질 암호화 영역이나 알려진 인핸서에 집중되었으나, 본 연구는 처음으로 OCRprox와 OCRdist를 기능이 상반된 한 쌍의 비암호화 조절 모듈로 기술하고, "IRF4 용량"이 Treg 운명을 결정한다는 용량-효과 모델을 제시하였다.
또 하나 주목할 만한 관찰은 OCRdist가 직접적으로 IRF4 인핸서로 작용하지는 않으며, 그 보호 작용이 간접적 기전을 통해 이루어지는 것으로 보인다는 점이다. 저자들은 이를 바탕으로 양성 피드백 가설을 제시하였다—IRF4와 AP-1이 OCRdist에서 협동적으로 결합하여 해당 영역의 개방을 더욱 강화하고, 되돌리기 어려운 운명 편향을 형성한다는 것이다. 이 모델은 아직 더 많은 실험적 검증을 필요로 한다.
실제적 의의
임상 전환의 관점에서 이 연구는 시사한다: 공학적으로 조작된 Treg 치료법의 안정성은 배양 방식뿐만 아니라 세포 내재적 조절 노드에도 달려 있을 수 있다. 제조 단계에서 OCRdist를 유전적으로 교란하면 이론적으로 염증 환경에서 Treg 불안정화 위험을 낮추어 안전성과 억제 효능을 함께 확보할 수 있다.
기전 연구의 관점에서 이 작업은 "염증이 세포 정체성을 어떻게 다시 쓰는가"라는 문제를 구체적인 비암호화 서열 수준으로 끌어내렸으며, 다른 조절 노드를 탐색하기 위한 재사용 가능한 실험 프레임워크를 제공한다. 강조할 점은, 위 결론이 주로 체외 모델과 이종 이식 모델에 근거하며, 인체 내에서도 동일하게 성립하는지는 여전히 장기 계통 추적 연구가 필요하다는 것이다.
요약 및 고찰
이 연구가 제시하는 그림은 다음과 같다: 인간 Treg는 상당한 계통 안정성을 지니지만, 이 안정성에는 염증이 지렛대로 작용할 수 있는 후성유전학적 지점이 존재한다. IL-23이 주도하는 염색질 리모델링과 AP-1 및 IRF4의 협동적 증폭이 함께 세포를 염증 촉진 상태로 밀어내며, 원위 요소 하나를 제거하는 것만으로도 그 항교란 능력을 크게 높일 수 있다.
독자에게 남겨진 열린 질문은 다음과 같다: 실제 만성 염증 미세환경에서 이러한 후성유전학적 변화는 가역적인가, 아니면 클론 증식과 함께 영구적으로 고정되는가? 만약 답이 후자라면, 조절 요소를 표적으로 하는 개입의 창은 우리가 예상하는 것보다 더 이른 시점일 수 있다.