유전성 소뇌 운동실조는 오랫동안 개입이 어려운 신경퇴행성 질환군으로 여겨져 왔다. 병인 유전자가 분비성 시냅스 조직 인자를 암호화하는 경우, 상황은 완전히 다를 수 있다. 최신 연구는 CBLN1 유전자의 양대립유전자 돌연변이로 인한 조기 발병 운동실조의 핵심 기전이 놀랍게도 시냅스외 인자의 결핍이며, 이 상태가 AAV 매개 유전자 전달을 통해 성체기에 역전될 수 있음을 밝혀냈다.
임상 표현형에서 병인 유전자까지: 두 가계의 핵심 단서
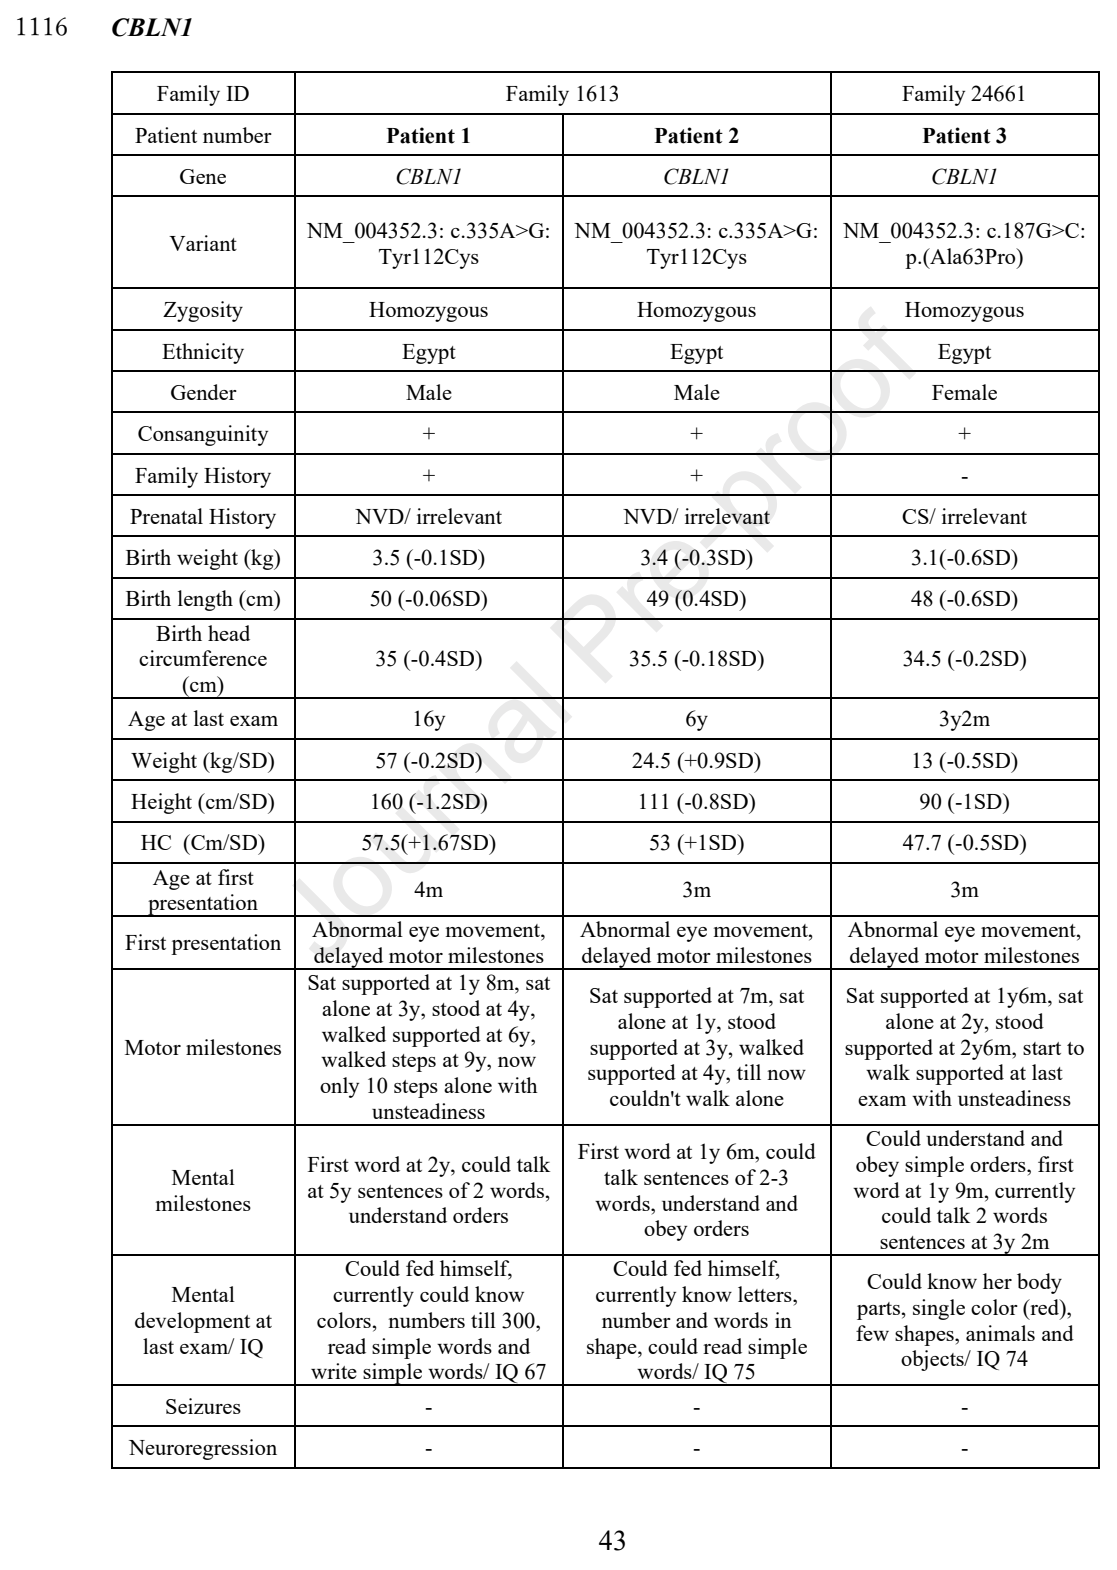
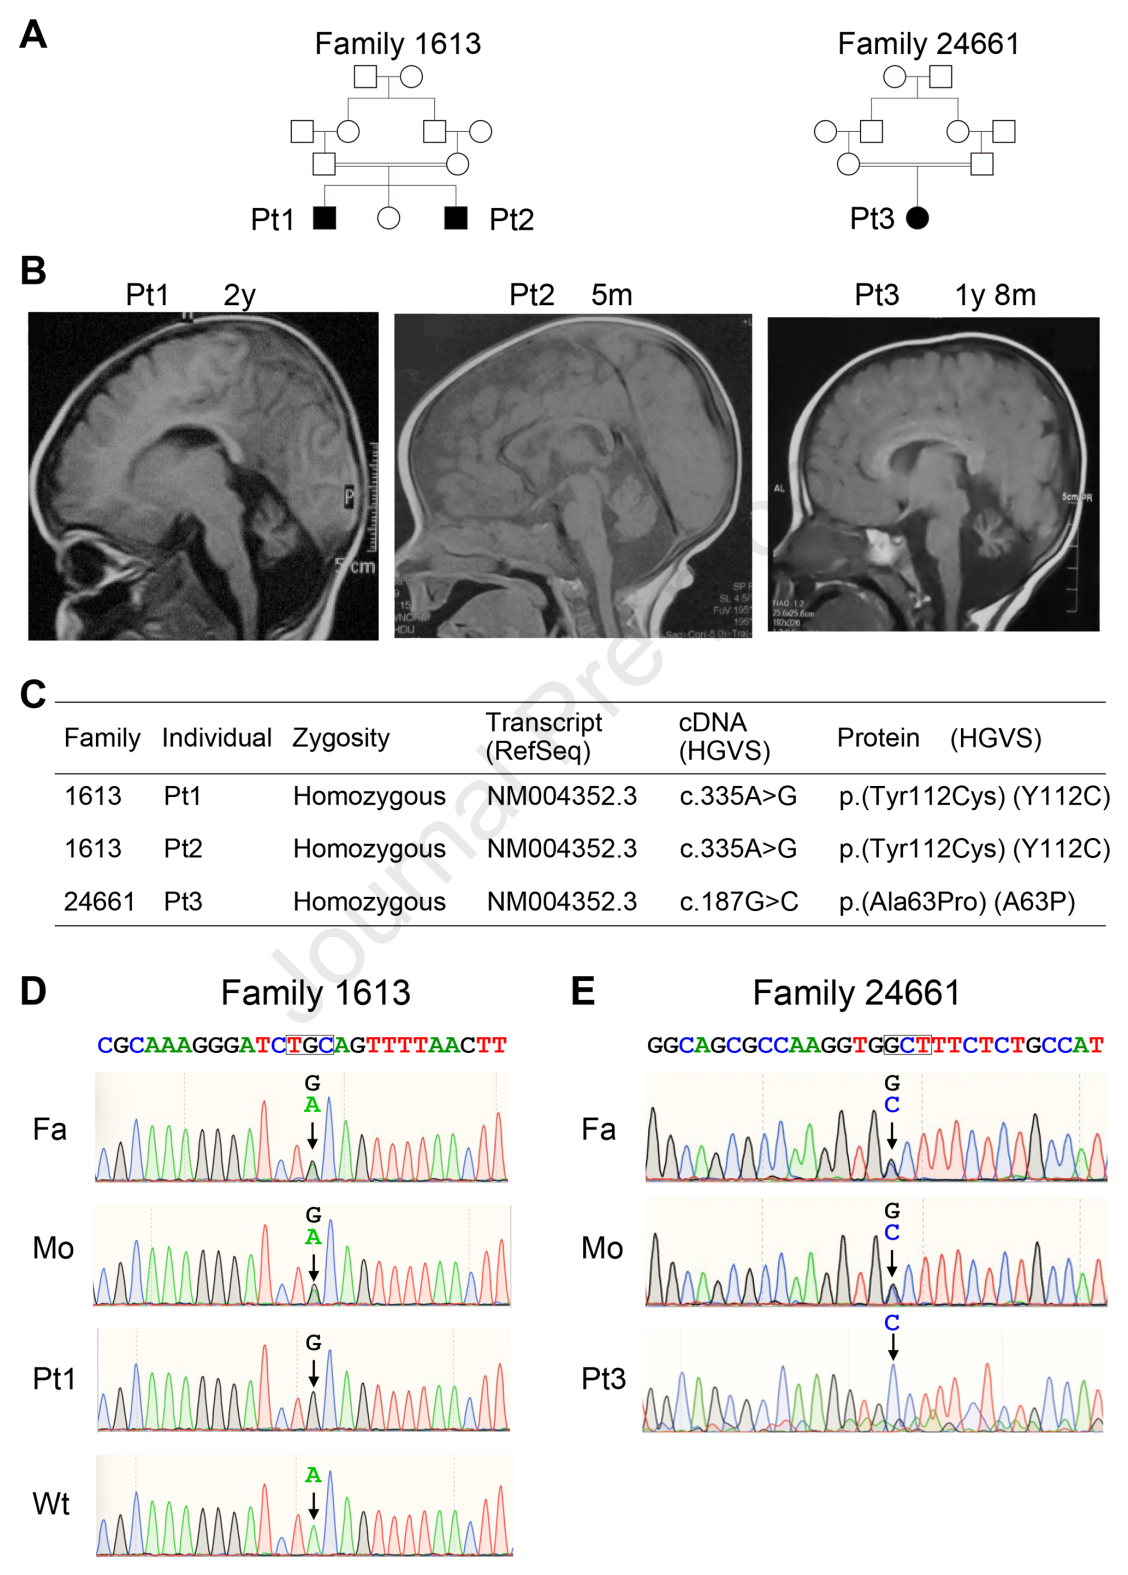
연구팀은 두 근친혼 이집트 가계에서 조기 발병 소뇌 운동실조 환자를 발견했다. 증상은 생후 3-4개월에 가장 먼저 나타났으며, 비정상적 안구 운동과 운동 발달 지연으로 발현되었다. 병이 진행됨에 따라 환아는 체간 및 사지 운동실조, 근긴장 저하, 진행성 보행 장애를 보였다. 뇌 MRI는 소뇌 위축을 보였으며, 충부에서 가장 두드러졌다.
전장유전체 시퀀싱은 두 가계에서 각각 CBLN1 유전자의 동형 접합 미스센스 돌연변이를 확인했다: c.187G>C (p.A63P) 및 c.335A>G (p.Y112C). Sanger 시퀀싱은 돌연변이와 질환의 공분리를 확인했으며, 상염색체 열성 유전 양식에 부합했다.
CBLN1이 암호화하는 Cbln1 단백질은 평행섬유-푸르키네 세포(PF-PC) 시냅스의 핵심 조직 인자이다. 이는 분비성 당단백질로서 시냅스전 뉴렉신과 시냅스후 글루탐산 수용체 δ2(GluD2)를 연결하며, 시냅스 형성과 장기 유지에 필수적이다. 이전에 Cbln1 녹아웃 마우스는 심각한 PF-PC 시냅스 결함을 보였으나, 이 유전자는 인간 질환과 관련된 것으로 입증된 적이 없었다.
돌연변이가 초래하는 기능적 세포외 결핍
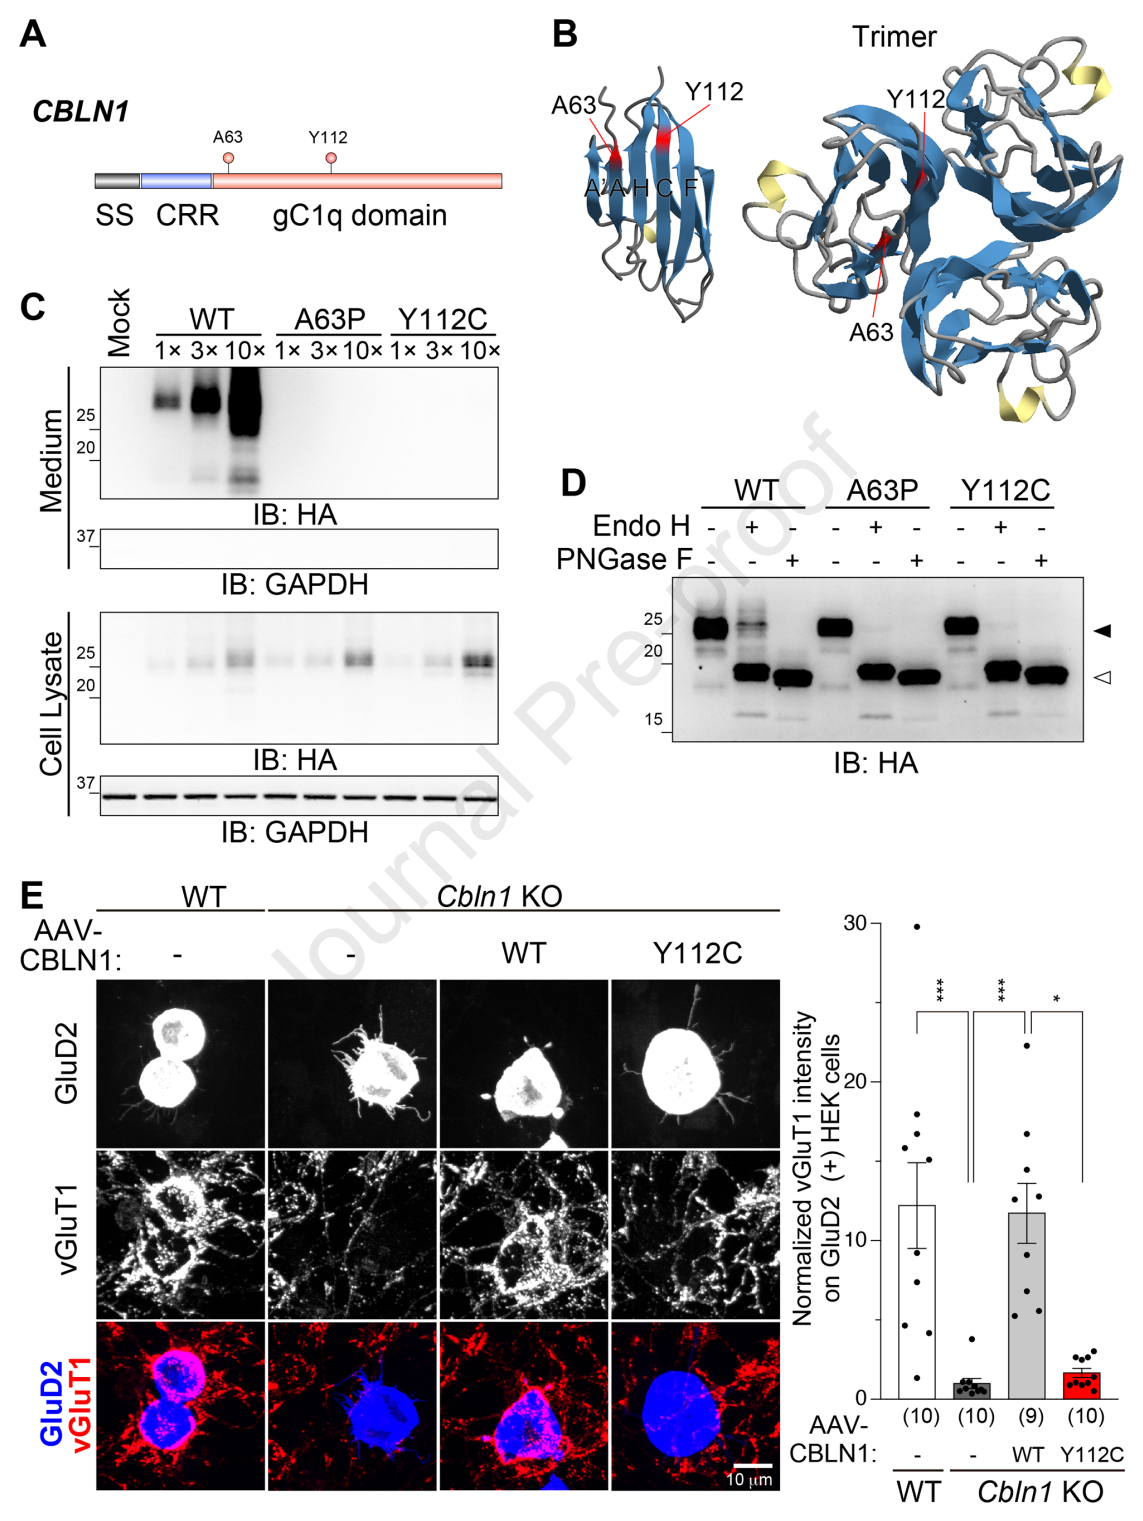
구조 분석은 A63과 Y112 두 잔기를 CBLN1 삼량체 아단위 접촉면 근처에 위치시켰다. 이는 돌연변이가 단백질 올리고머화를 파괴하여 안정성, 세포내 수송 및 분비에 영향을 미칠 수 있음을 시사한다. 체외 실험은 이 가설을 확인했다: 두 돌연변이체는 HEK293 세포에서 정상 상태 단백질 수준이 현저히 감소했으며, 조건 배지에서 분비 단백질이 거의 검출되지 않았다.
당화 분석은 더 정교한 기전을 밝혀냈다. 야생형 CBLN1은 엔도글리코시다제 H에 저항성을 보이는 성숙 당형을 함유하여, 단백질이 소포체/시스 골지체를 통과하여 가공을 완료했음을 나타낸다. 반면 두 돌연변이체의 성숙 당형은 현저히 감소하여, 단백질이 초기 분비 경로에 정체되었음을 시사한다. 이러한 정방향 수송 장애는 세포외 CBLN1 가용성의 대폭적인 감소를 직접 초래한다.
기능 실험은 이 결론을 추가로 검증했다. 인공 시냅스 형성 실험에서 CBLN1-Y112C를 발현하는 소뇌 과립 세포는 GluD2를 발현하는 세포에서 시냅스전 분화를 유도하지 못했으며, 이는 Cbln1 녹아웃 세포의 양상과 일치했다. 이는 돌연변이 단백질이 기능적 수준에서 완전 결핍과 동등함을 나타낸다.
녹인 마우스 모델: 분자 결함에서 행동 표현형까지
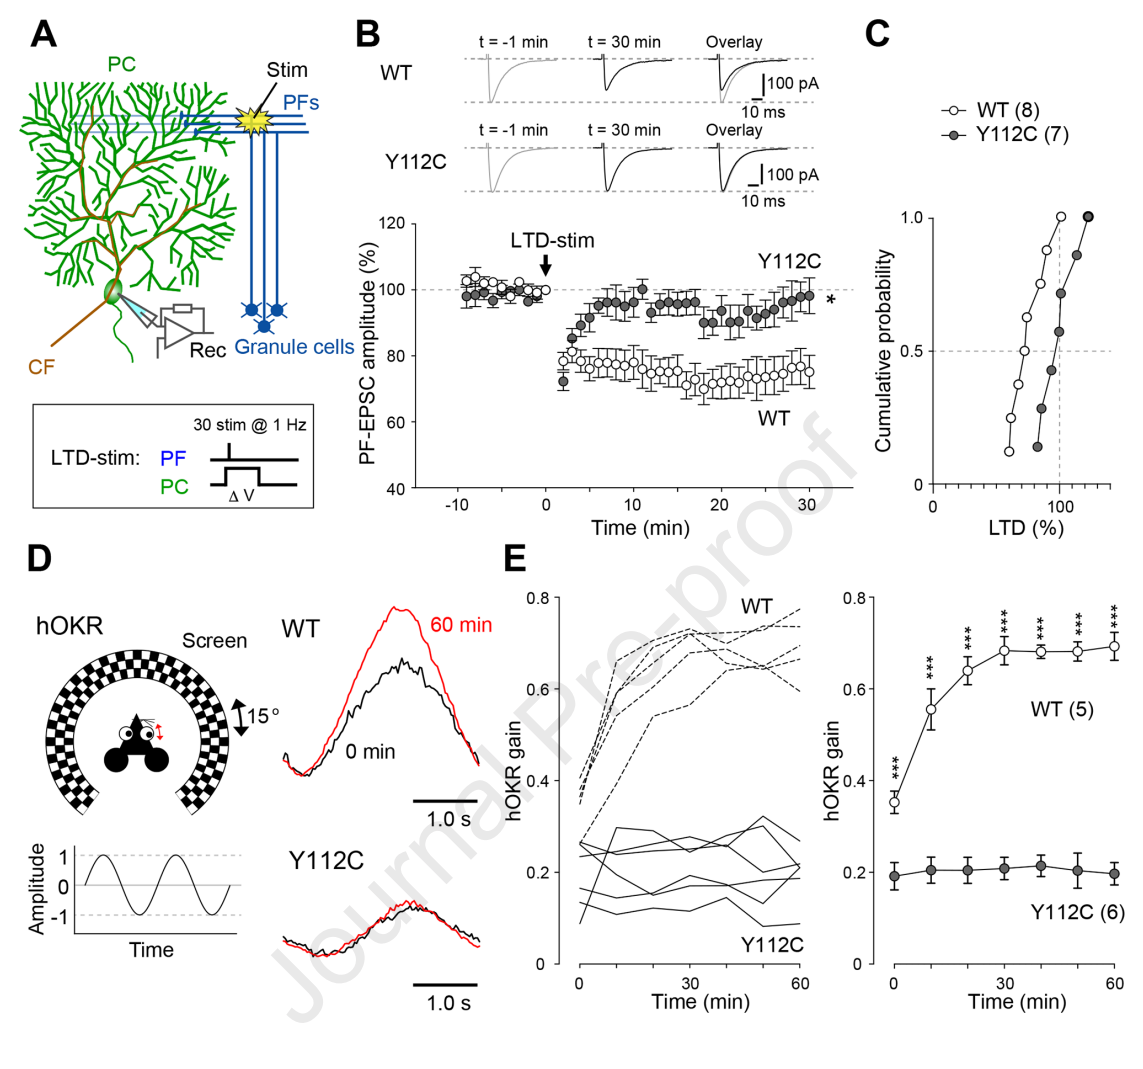
체내에서 질환 기전을 검증하기 위해, 연구자들은 Y112C 돌연변이를 지닌 Cbln1 녹인 마우스를 구축했다. 동형 돌연변이 마우스는 멘델 비율로 태어났으며, 소뇌 소엽 구조와 층상 배열은 기본적으로 보존되었으나 소뇌 부피가 현저히 감소했다——충부 단면적은 야생형 대비 약 28% 감소하여 환자의 영상학적 소견과 일치했다.
면역조직화학은 녹인 마우스 소뇌 피질에서 시냅스에 위치한 Cbln1 신호가 거의 검출되지 않음을 보여주었으며, 이는 Cbln1 녹아웃 조직과 매우 유사했다. 행동학 분석은 일련의 결함을 밝혀냈다: 돌연변이 마우스는 로타로드에서 수 초 내에 떨어졌고, 보행 분석은 후지 협응 이상을 보였으며, 비디오 안구운동 기록은 비정상적으로 증대된 자발적 안구 운동을 기록했다——환자의 운동 및 소뇌 안구운동 표현형을 정확히 재현했다.
전기생리학적 기록은 시냅스 수준의 이상을 추가로 명확히 했다. 돌연변이 마우스의 PF 유발 EPSC 진폭은 현저히 감소했고, 이중 펄스 촉진은 증가하여 시냅스전 방출 확률 저하를 시사했다. 더욱 핵심적으로, 소뇌 운동 학습의 핵심 기전인 PF-PC 장기 억제(LTD)가 돌연변이 마우스에서 완전히 결핍되었으며, 시운동성 안구 반응(OKR) 적응 능력도 심각하게 손상되었다.
성상교세포 표적 AAV: 성체기 복구의 가역적 전략
재조합 Cbln1 단백질 직접 전달은 돌연변이 마우스의 운동 기능을 일시적으로 개선했으나, 효과는 약 일주일만 지속되었다. 이는 연구자들로 하여금 지속적인 세포외 CBLN1을 제공할 수 있는 전략을 탐색하게 했다. 핵심 설계 결정 중 하나는 세포 공급원 선택이었다: 과립 세포가 직접 CBLN1을 발현하도록 구동하려는 시도는 프로모터 활성 부족으로 실패했고, 연구는 성상교세포로 눈을 돌렸다.
성상교세포는 분자층에서 PF-PC 시냅스와 밀접하게 인접해 있으며, Bergmann 교세포 돌기는 시냅스 구조를 둘러싸 이상적인 국소 분비 미세환경을 구성한다. 더욱 중요하게, CBLN1은 세포외에서 작용하며, 그疗效는 주로 세포외 가용성과 시냅스 표적화에 달려 있으며, 반드시 내인성 신경세포 공급원에서 발현될 필요는 없다. 트랜스진을 비신경세포로 제한하는 것은 이소성 신경세포 발현이 시냅스 형성을 방해할 위험을 낮출 수도 있다.
연구자들은 성상교세포 특이적 프로모터 GfaABC1D에 의해 HA-CBLN1 발현을 구동하는 AAV 벡터를 구축하고, 안와후 주사를 통해 성체 돌연변이 마우스에 전신 전달했다. 면역조직화학은 광범위한 소뇌 형질도입을 확인했으며, HA 신호는 분자층에 농축되고 GluD2와 공동 국재하여 분비된 CBLN1이 시냅스 부위에 성공적으로 도달했음을 나타냈다.
치료 효과는 놀라웠다. 처리군 마우스의 PF-PC 시냅스 전후 정렬이 개선되고, PF 전달 기능이 회복되며, CF 단일 신경지배가 재건되고, LTD가 성공적으로 재유도되었다. 행동 수준에서 돌연변이 마우스는 OKR 적응 능력을 회복했고, 로타로드 및 treadmill 수행은 야생형 수준에 근접했으며, 비정상 자발적 안구 운동이 교정되었다. 이러한 개선은 주사 후 1-2개월에 정량적으로 확인되었으며, 일부 표현형 개선은 최소 6개월간 지속되었다.
공정 시사점과 열린 질문
이 연구의 가치는 CBLN1 결핍을 치료 가능한 시냅스병으로 확립한 것뿐만 아니라, AAV 공정 개발에 여러 시사점을 제공한 데 있다.
표적 세포 선택의 전략적 의의: 치료 단백질이 세포외에서 기능할 때, 내인성 발현 세포가 유일한 선택은 아니다. 성상교세포는 대체 생산원으로서 해부학적 근접성과 광범위한 분포라는 이점을 겸비한다. 이는 공정 개발에서 세포 유형 특이성 추구에 국한되지 않고, 다양한 프로모터-세포 조합의 적합성을 체계적으로 평가해야 함을 시사한다.
전달 경로와 생물분포: 전신 전달은 광범위한 소뇌 형질도입을 달성했으나, 해마와 대뇌 피질 등 뇌외 영역에서도 이소성 발현을 초래했다. 이러한 분포는 내인성 Cbln1 양상과 달라 알려지지 않은 뇌외 효과를 초래할 수 있다. 공정 측면에서 이는 치료적 분포와 잠재적 위험 분포를 구분하는 더 정교한 벡터 생물분포 평가 체계를 구축해야 함을 의미한다.
단백질 대체 vs 유전자 전달의 지속성 트레이드오프: 재조합 단백질 직접 전달의 효과는 일시적이었으나, AAV 매개 지속적 발현은 장기 복구의 가능성을 제공했다. 이 대비는 지속적 분비 단백질이 필요한 상황에서 유전자 전달의 공정 가치를 강화하며, 반감기와 투여 빈도가 전달 전략 선택의 핵심 매개변수가 되어야 함을 시사한다.
성체기 가역성의 기전적 의의: 광범위한 표현형 역전은 상당 부분의 병리적 변화가 구조적 손상이 아닌 기능적 변화임을 나타낸다. 이는 환자 선별과 임상시험 설계에 직접적 의의가 있다——영상학적으로 소뇌 위축이 이미 나타났더라도, 시냅스 수준의 기능 복구는 여전히 임상적 이득을 가져올 수 있다.
한 가지 깊이 생각해볼 문제는: 성상교세포가 분비 단백질 생산원으로서 성공한 것이, 분비성 시냅스 조직 인자 결핍으로 인한 다른 신경 질환에도 유사한 전략을 적용할 수 있음을 의미하는가? 치료 표적이 신경세포 내에서 시냅스 간극으로 전환될 때, 벡터 향성과 발현 지속성에 대한 우리의 요구는 재정의되어야 하는가?